Cinética de reacción más allá del libro de texto: de la velocidad intrínseca al comportamiento observado
Qué cambia cuando la ley cinética entra en un biorreactor continuo de 60 L
Una ley cinética describe una velocidad bajo condiciones definidas; un proceso observado combina esa ley con inventario, flujo, historia y medición. Esta publicación desarrolla esa distinción mediante un biorreactor continuo pedagógico de 60 L con un sustrato limitante. Se acoplan una expresión de Monod, decaimiento y balances de biomasa y sustrato para estudiar estado estacionario, productividad, lavado y respuesta dinámica. En el punto nominal, 9.00000 L/h producen un tiempo espacial de 6.66667 h, 0.54400 g/L de sustrato y 8.58353 g/L de biomasa. El límite estacionario calculado es D = 0.38385 h⁻¹; superarlo no elimina instantáneamente la biomasa, pero cambia el signo de su tasa neta. Un ejemplo de ajuste muestra además que datos concentrados cerca de saturación pueden reproducirse con parámetros distintos y divergir al extrapolar. El artículo propone tratar parámetros, predicciones y decisiones como afirmaciones separadas, acompañadas por sensibilidad, incertidumbre y dominio de validez. Todos los datos y gráficos son sintéticos y reproducibles; no representan NFB-001, un equipo NFB, un cultivo ni una operación comercial.
cinética de reacción, Monod, quimiostato, lavado, identificabilidad, incertidumbre
Edición publicada v1.0 · G8 aprobado
English · PDF: usa el botón ⎙ o Ctrl+P · Fuente científica
Por qué una constante no explica un proceso
La cinética suele presentarse como una ecuación compacta: una velocidad depende de una concentración y de algunos parámetros. Esa representación es indispensable, pero no es todavía una descripción completa de lo que observa un sensor o entrega un reactor. La cantidad observada resulta de una cadena: biología o química intrínseca, ley constitutiva, balances de materia, condiciones de operación, dinámica del equipo y sistema de medición. Confundir un eslabón con toda la cadena conduce a atribuir al microorganismo un cambio que provino del caudal, o a llamar “constante” a un parámetro efectivo que solo funciona en una ventana experimental.
El ejemplo conductor es un biorreactor continuo genérico de 60 L con mezcla perfecta, volumen constante y un sustrato limitante. No modela el NFB-001, un equipo NFB de 60 L, una cepa, una receta ni una planta real. Se eligió porque permite conectar la publicación anterior sobre tiempo de residencia con una pregunta nueva: ¿qué ocurre cuando el tiempo disponible para transformar materia compite con la velocidad de crecimiento?
El objetivo no es enseñar a ajustar una curva de manera mecánica. Es construir criterio para separar velocidad intrínseca, tasa neta, respuesta del reactor, calidad del ajuste y capacidad de predicción. El resultado práctico es una forma más prudente de usar modelos: declarar qué se midió, qué se supuso, qué se estimó y hasta dónde puede extrapolarse.
De la biología a la afirmación
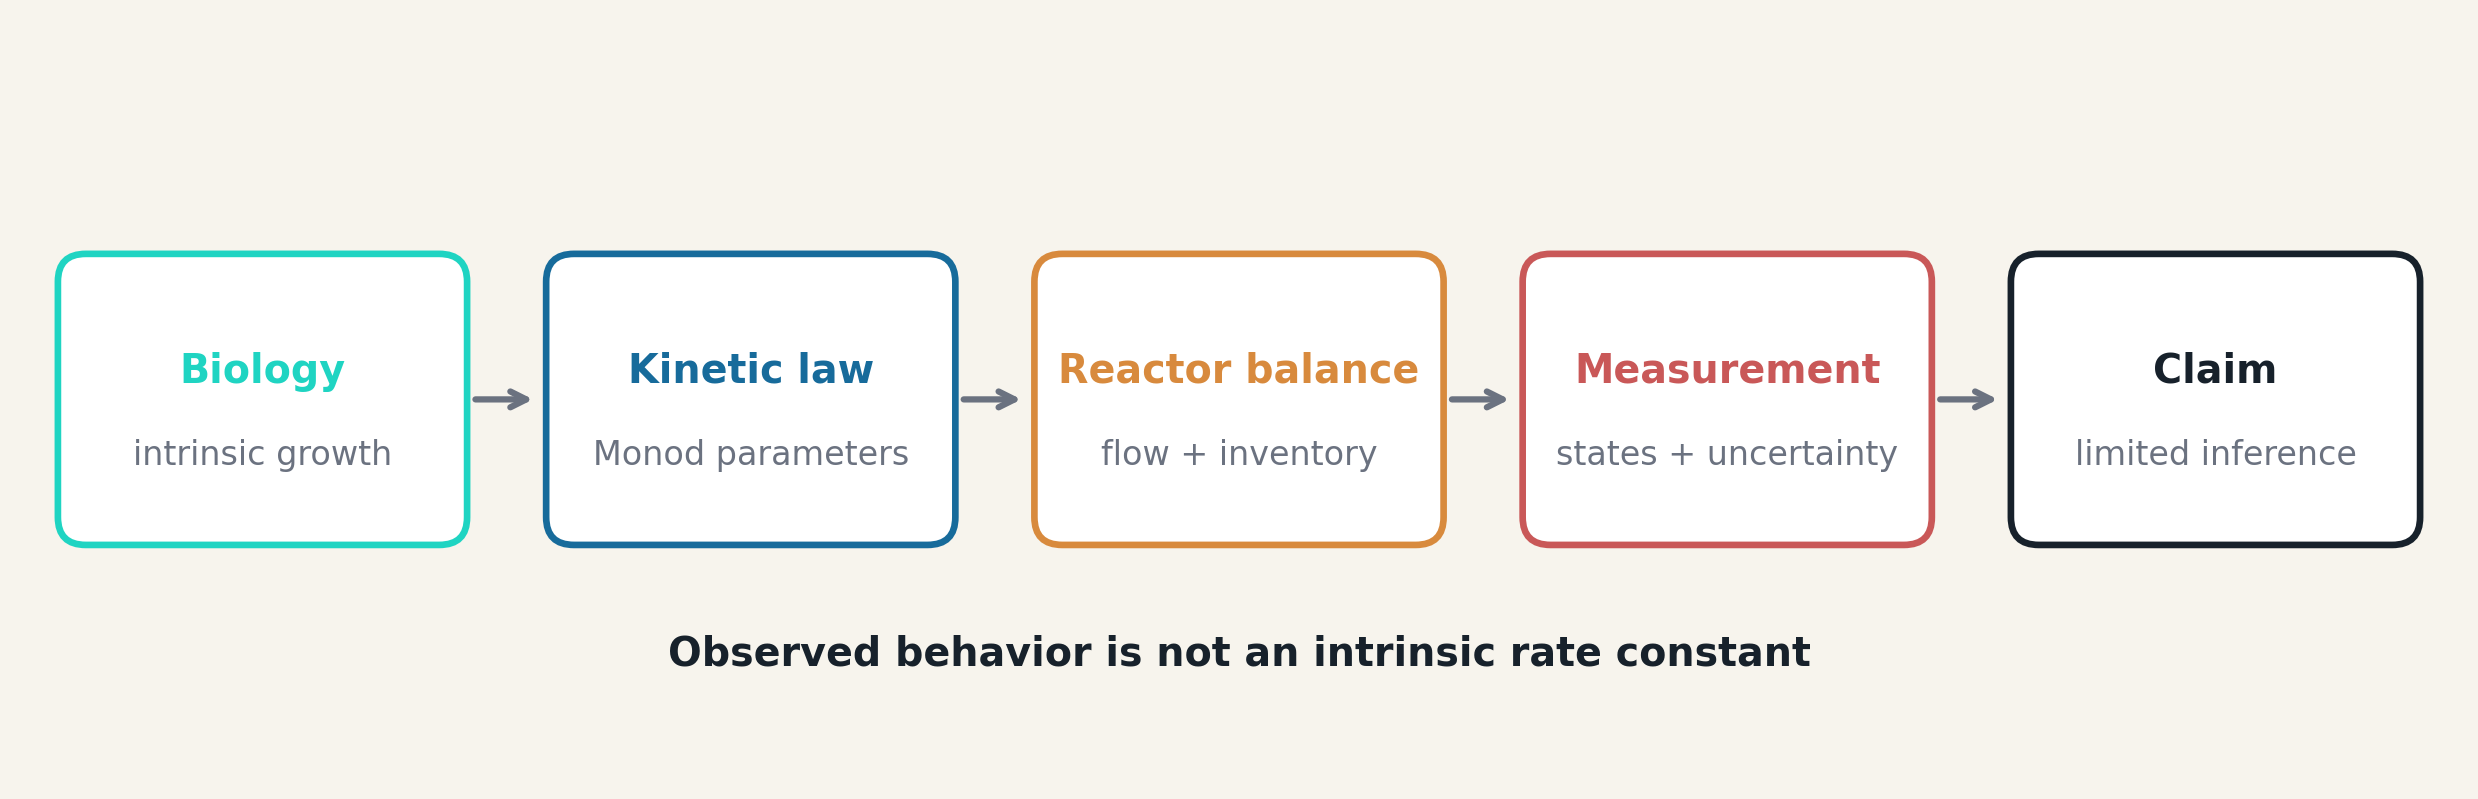
La Figura 1 resume cinco capas. La primera es el fenómeno intrínseco: células que crecen, sustrato que se consume y biomasa que pierde actividad. La segunda es una ley cinética elegida para representar ese fenómeno. La tercera incorpora inventario y flujo mediante balances. La cuarta agrega medición e incertidumbre. Solo entonces aparece una afirmación, que debe conservar las restricciones de las capas anteriores.
Una curva de biomasa a la salida no identifica por sí sola la velocidad máxima de crecimiento. El mismo perfil puede cambiar si varían el caudal, la concentración de alimentación, el rendimiento, el estado inicial o el decaimiento. A su vez, dos conjuntos de parámetros pueden producir curvas casi iguales en la zona observada y predicciones muy distintas fuera de ella. Por eso “el modelo ajusta” y “el parámetro está identificado” no son sinónimos.
Este esquema también previene una lectura comercial indebida. Un cálculo pedagógico no valida una tecnología. El caso sirve para explicar dependencias y pruebas necesarias; no certifica productividad, robustez o escalabilidad de un biorreactor particular.
El caudal se convierte en una escala cinética
Para un tanque de volumen constante \(V\) alimentado con caudal \(Q\), la tasa de dilución es:
\[ D=\frac{Q}{V}=\frac{1}{\tau}. \tag{1}\]
\(D\) tiene unidades de h⁻¹ y $ au$ es el tiempo espacial. En el caso nominal, \(V=60\) L y \(Q=9.00000\) L/h, de modo que \(D=0.15000\) h⁻¹ y $ au=6.66667$ h. Este cociente no dice cuánto tarda cada elemento de fluido, como mostró PSF-004; aquí cumple otra función: fija la intensidad con la que el flujo renueva el inventario.
Si la biomasa no crece, la salida la remueve con escala \(D\). Si crece, la persistencia depende de la competencia entre crecimiento, decaimiento y dilución. Aumentar \(Q\) no equivale simplemente a “producir más”. También reduce el tiempo disponible y desplaza el estado del sistema. El flujo es, por tanto, una variable hidrodinámica con consecuencias cinéticas.
Monod como hipótesis útil, no como ley universal
La representación de Monod relaciona la tasa específica de crecimiento \(mu\) con el sustrato limitante \(S\):
\[ \mu(S)=\mu_{\max}\frac{S}{K_s+S}. \tag{2}\]
\(mu_{\max}\) es la asíntota de crecimiento y \(K_s\) es la concentración donde \(mu=mu_{\max}/2\). Ambas cantidades dependen del sistema biológico, medio, temperatura, definición de biomasa y método de estimación. El artículo clásico de Monod formalizó esta relación empírica y su utilidad para interpretar cultivos (Monod 1949). El quimiostato, descrito tempranamente por Novick y Szilard, permitió controlar la tasa de crecimiento mediante alimentación continua (Novick y Szilard 1950).
El modelo es monotónico y saturante. Es apropiado como primera hipótesis cuando un sustrato limita y no hay inhibición relevante. No representa automáticamente regulación, múltiples sustratos, heterogeneidad celular, toxicidad, cambios de rendimiento ni limitación de oxígeno. La formulación de Contois introduce dependencia con densidad celular (Contois 1959), mientras Andrews mostró un modelo para sustratos inhibitorios (Andrews 1968). Elegir Monod no declara falsas esas alternativas; declara que todavía no se necesitan para la pregunta analizada.
Dónde está la información en la curva
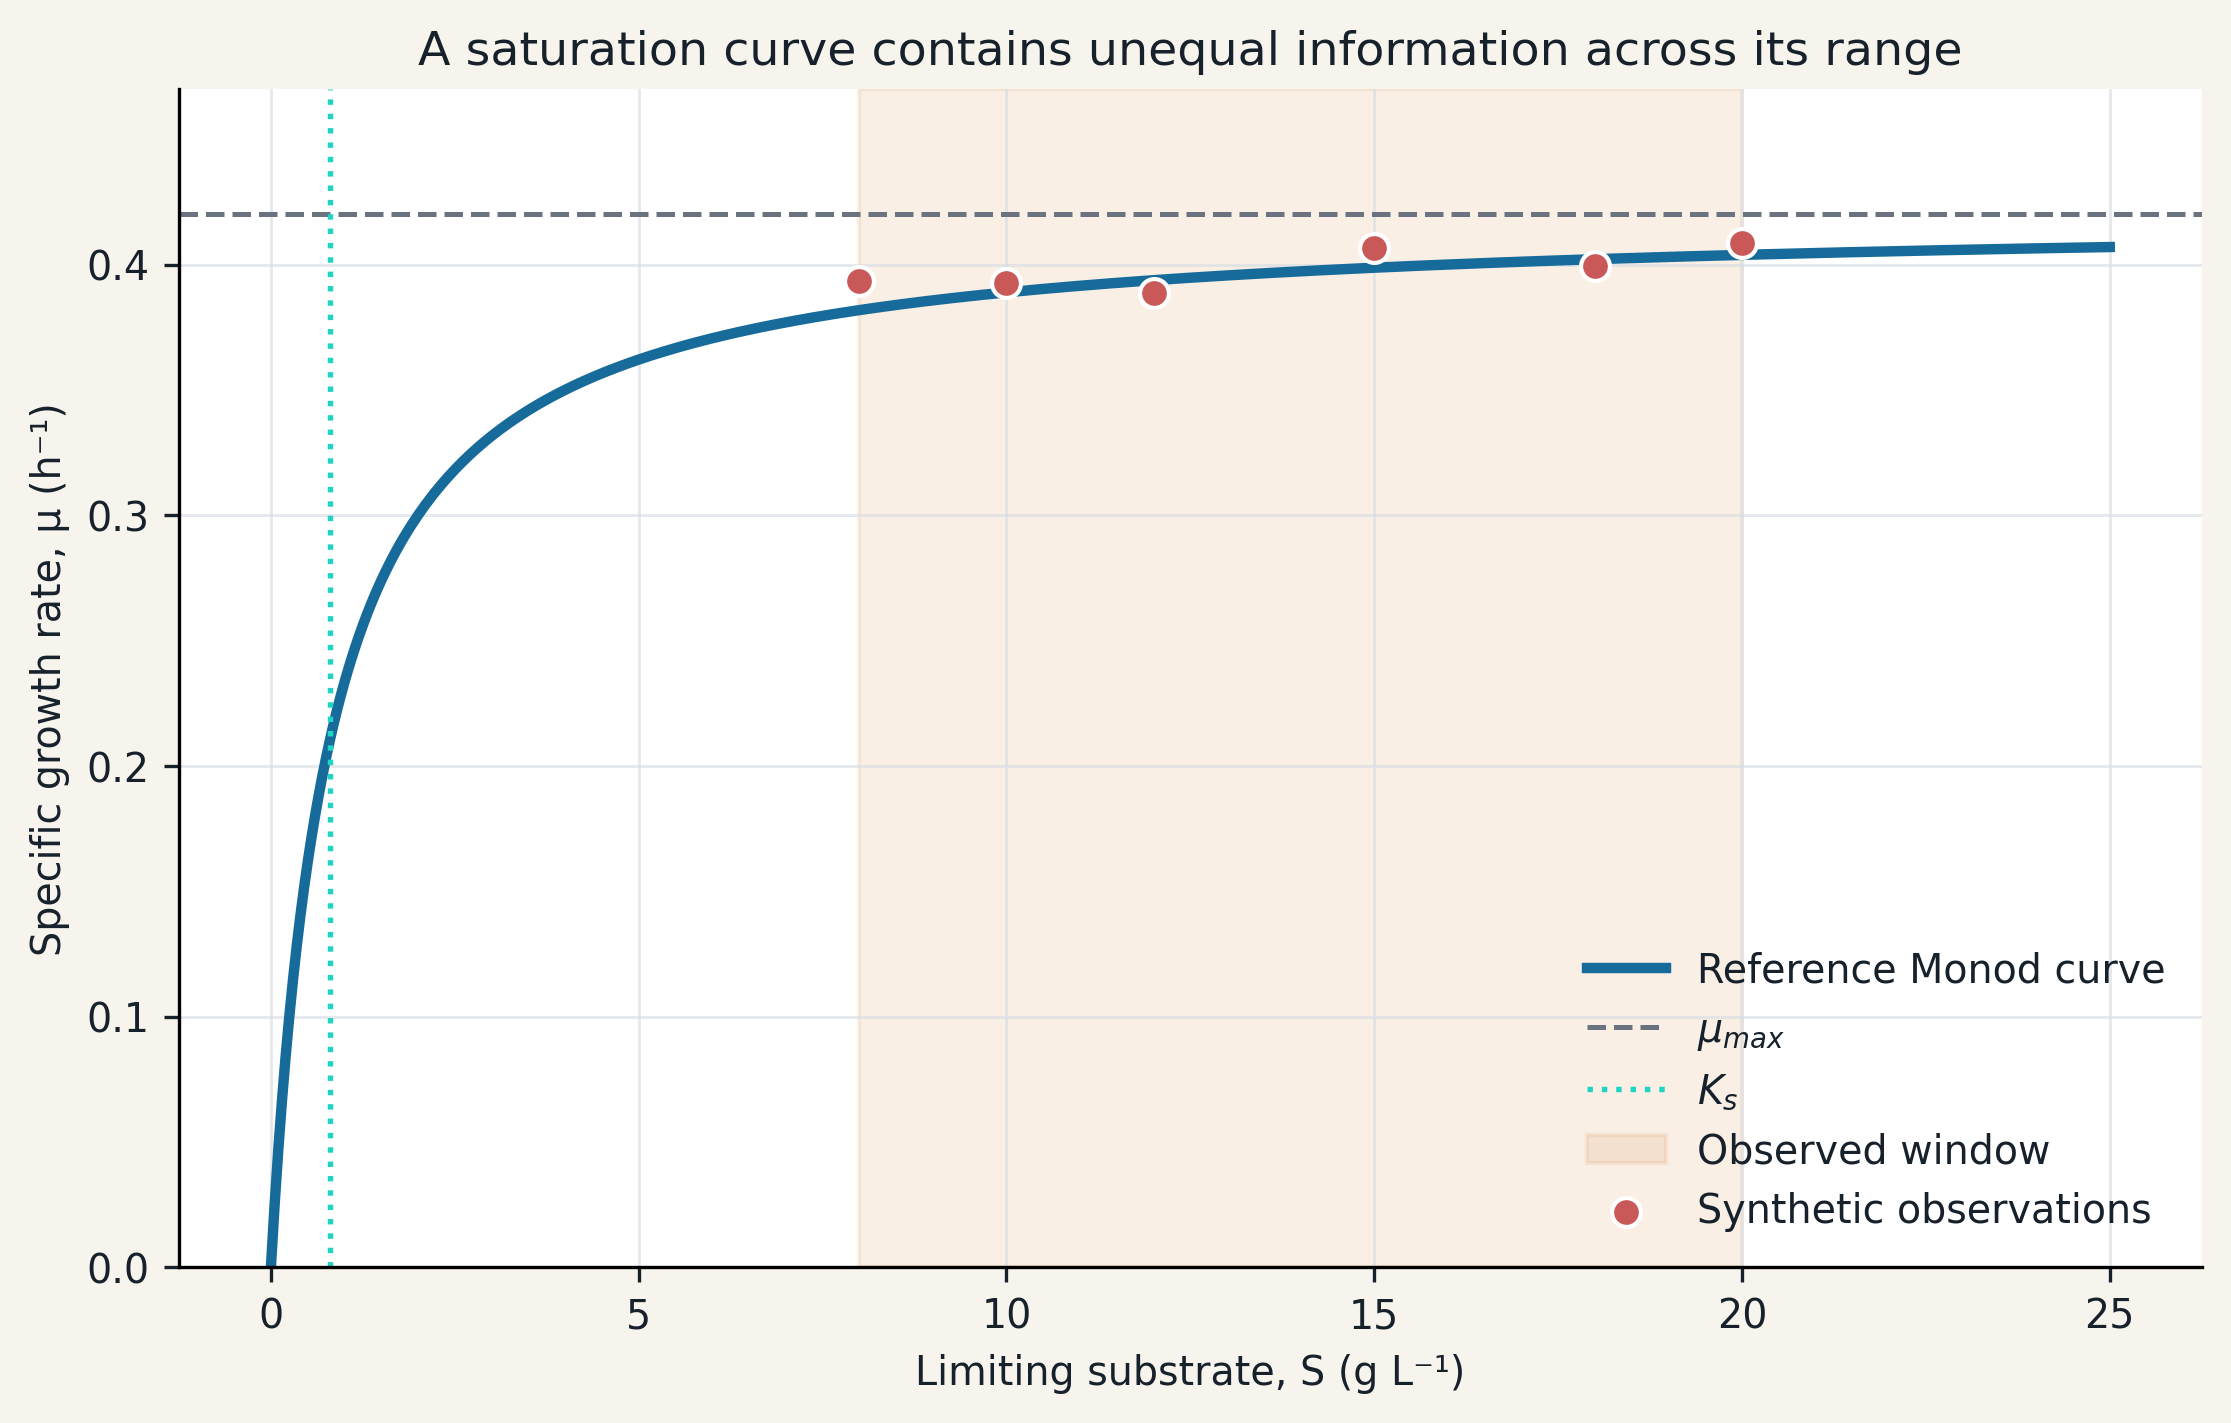
La Figura 2 muestra \(mu_{max}=0.42\) h⁻¹ y \(K_s=0.80\) g/L. Cerca de \(S=0\), la pendiente es aproximadamente \(mu_{max}/K_s\); alrededor de \(K_s\), la curvatura contiene información sobre ambos parámetros; a concentraciones muy altas, la curva se aproxima a \(mu_{max}\) y pierde sensibilidad relativa a \(K_s\).
Las observaciones sintéticas están entre 8 y 20 g/L, muy por encima de \(K_s\). Esa ventana caracteriza razonablemente la meseta, pero contiene poca evidencia directa sobre la posición de la media saturación. Un ajuste puede tener residuos pequeños y aun así dejar \(K_s\) débilmente determinado. Esta es una propiedad del diseño experimental, no un defecto que desaparezca con más decimales.
La figura usa ruido simulado con desviación estándar de 0.006 h⁻¹ y semilla fija 2405. Los puntos no son datos de cultivo. Su propósito es visualizar cómo la ubicación de las observaciones controla la información disponible.
Balance dinámico de biomasa
Para biomasa \(X\) sin entrada celular, con decaimiento de primer orden \(k_d\), el balance de un CSTR ideal es:
\[ \frac{dX}{dt}=\left[\mu(S)-D-k_d\right]X. \tag{3}\]
La tasa neta por unidad de biomasa es \(mu-D-k_d\). Cada término tiene unidades de h⁻¹. La ecuación supone mezcla perfecta, volumen constante, propiedades uniformes y una biomasa representada por una sola variable. No distingue células viables, activas e inactivas; por eso \(k_d\) es una simplificación efectiva.
El signo de la tasa neta determina la dirección instantánea, no el destino inmediato. Si es positivo, \(X\) aumenta localmente; si es negativo, disminuye de forma continua. Un cambio de caudal no puede borrar el inventario en un instante. Esta distinción entre criterio estacionario y trayectoria evita interpretar “lavado” como un interruptor binario.
Balance dinámico de sustrato
El sustrato entra a concentración \(S_{in}\), sale a concentración \(S\) y se consume con rendimiento \(Y_{X/S}\):
\[ \frac{dS}{dt}=D(S_{in}-S)-\frac{1}{Y_{X/S}}\mu(S)X. \tag{4}\]
El primer término es transporte neto por flujo; el segundo convierte crecimiento en demanda de sustrato. Para el caso se usan \(S_{in}=20\) g/L y \(Y_{X/S}=0.50\) gX/gS. El rendimiento constante permite cerrar el problema, pero no separa crecimiento de mantenimiento. Pirt demostró por qué el consumo asociado a mantenimiento puede hacer que el rendimiento observado dependa de la tasa de crecimiento (Pirt 1965).
Tampoco se incluye transferencia de masa. Si el reactivo limitante fuera oxígeno y existieran gradientes entre fase gas, líquido y células, \(S\) no sería una variable uniforme suficiente. Esa ampliación corresponde a PSF-007. Aquí se mantiene una frontera deliberadamente simple para examinar la interacción entre cinética y flujo.
Estado estacionario no significa inmovilidad
En un estado estacionario no trivial, \(dX/dt=0\) con \(X>0\), por lo que:
\[ \mu(S^*)=D+k_d. \tag{5}\]
La igualdad no significa que las células dejaron de crecer. Significa que crecimiento y pérdidas se compensan en el inventario promedio. Materia continúa entrando, reaccionando y saliendo. El estado es dinámico en escala microscópica y constante en las variables macroscópicas elegidas.
Herbert, Elsworth y Telling desarrollaron la teoría y el estudio experimental de cultivos continuos, incluyendo la relación entre crecimiento y dilución (Herbert et al. 1956). Su legado metodológico es importante: los balances convierten una observación estacionaria en una restricción sobre tasas, pero la interpretación requiere conocer pérdidas, alimentación y definición de biomasa.
Solución estacionaria del sustrato
Al combinar Monod con la condición estacionaria se obtiene:
\[ S^*=K_s\frac{D+k_d}{\mu_{\max}-D-k_d}. \tag{6}\]
La solución existe cuando el denominador es positivo y cuando \(S^*<S_{in}\). Con \(D=0.15000\) h⁻¹, el modelo da \(S^*=0.54400\) g/L. El resultado no es una medición: depende de parámetros supuestos y de la idealización de mezcla. Su valor reside en mostrar la dependencia funcional. Al aumentar \(D\), el sustrato residual crece porque el sistema debe alcanzar una \(mu\) mayor para compensar la extracción.
Cerca del límite, el denominador se reduce y la sensibilidad aumenta. Una pequeña diferencia en \(mu_{max}\), \(k_d\) o \(D\) puede provocar una gran diferencia en \(S^*\). Esa amplificación es una advertencia operativa y metrológica: trabajar cerca de una frontera exige más evidencia, no solo una predicción puntual.
Solución estacionaria de biomasa
Usando el balance de sustrato, la biomasa estacionaria es:
\[ X^*=Y_{X/S}\frac{D}{D+k_d}(S_{in}-S^*). \tag{7}\]
En el punto nominal se obtiene \(X^*=8.58353\) g/L. El factor \(D/(D+k_d)\) muestra la penalización asociada al decaimiento; si \(k_d=0\), la expresión se reduce a rendimiento por sustrato consumido. La biomasa no es simplemente \(Y_{X/S}(S_{in}-S)\) cuando existen pérdidas.
La ecuación también muestra que aumentar alimento no garantiza un aumento proporcional de biomasa. \(S_{in}\) aparece directamente, pero cambios osmóticos, inhibición o nueva limitación pueden invalidar el rendimiento y la ley cinética. La predicción es condicional: “si el modelo y sus parámetros siguen siendo válidos”.
La frontera de lavado
El estado no trivial desaparece cuando el crecimiento máximo disponible en la alimentación no compensa dilución y decaimiento:
\[ D_{crit}=\mu(S_{in})-k_d. \tag{8}\]
Para el caso, \(D_{crit}=0.38385\) h⁻¹, equivalente a \(Q_{crit}=23.03077\) L/h y $ au_{crit}=2.60521$ h. Este umbral se calcula con \(S_{in}=20\) g/L, no con \(mu_{max}\) aislada. Aunque la alimentación está cerca de saturación, la diferencia conceptual importa.
Por debajo del umbral puede existir un estado con biomasa positiva. Por encima, la tasa neta se vuelve negativa incluso cuando el sustrato se aproxima a la alimentación. “Crítico” no significa seguro o inseguro por sí solo. En operación real deben considerarse incertidumbre, perturbaciones, mezclado, retardo de medición y objetivos de calidad; por ello no se recomienda operar exactamente sobre una frontera nominal.
Mapa de dilución, biomasa y sustrato
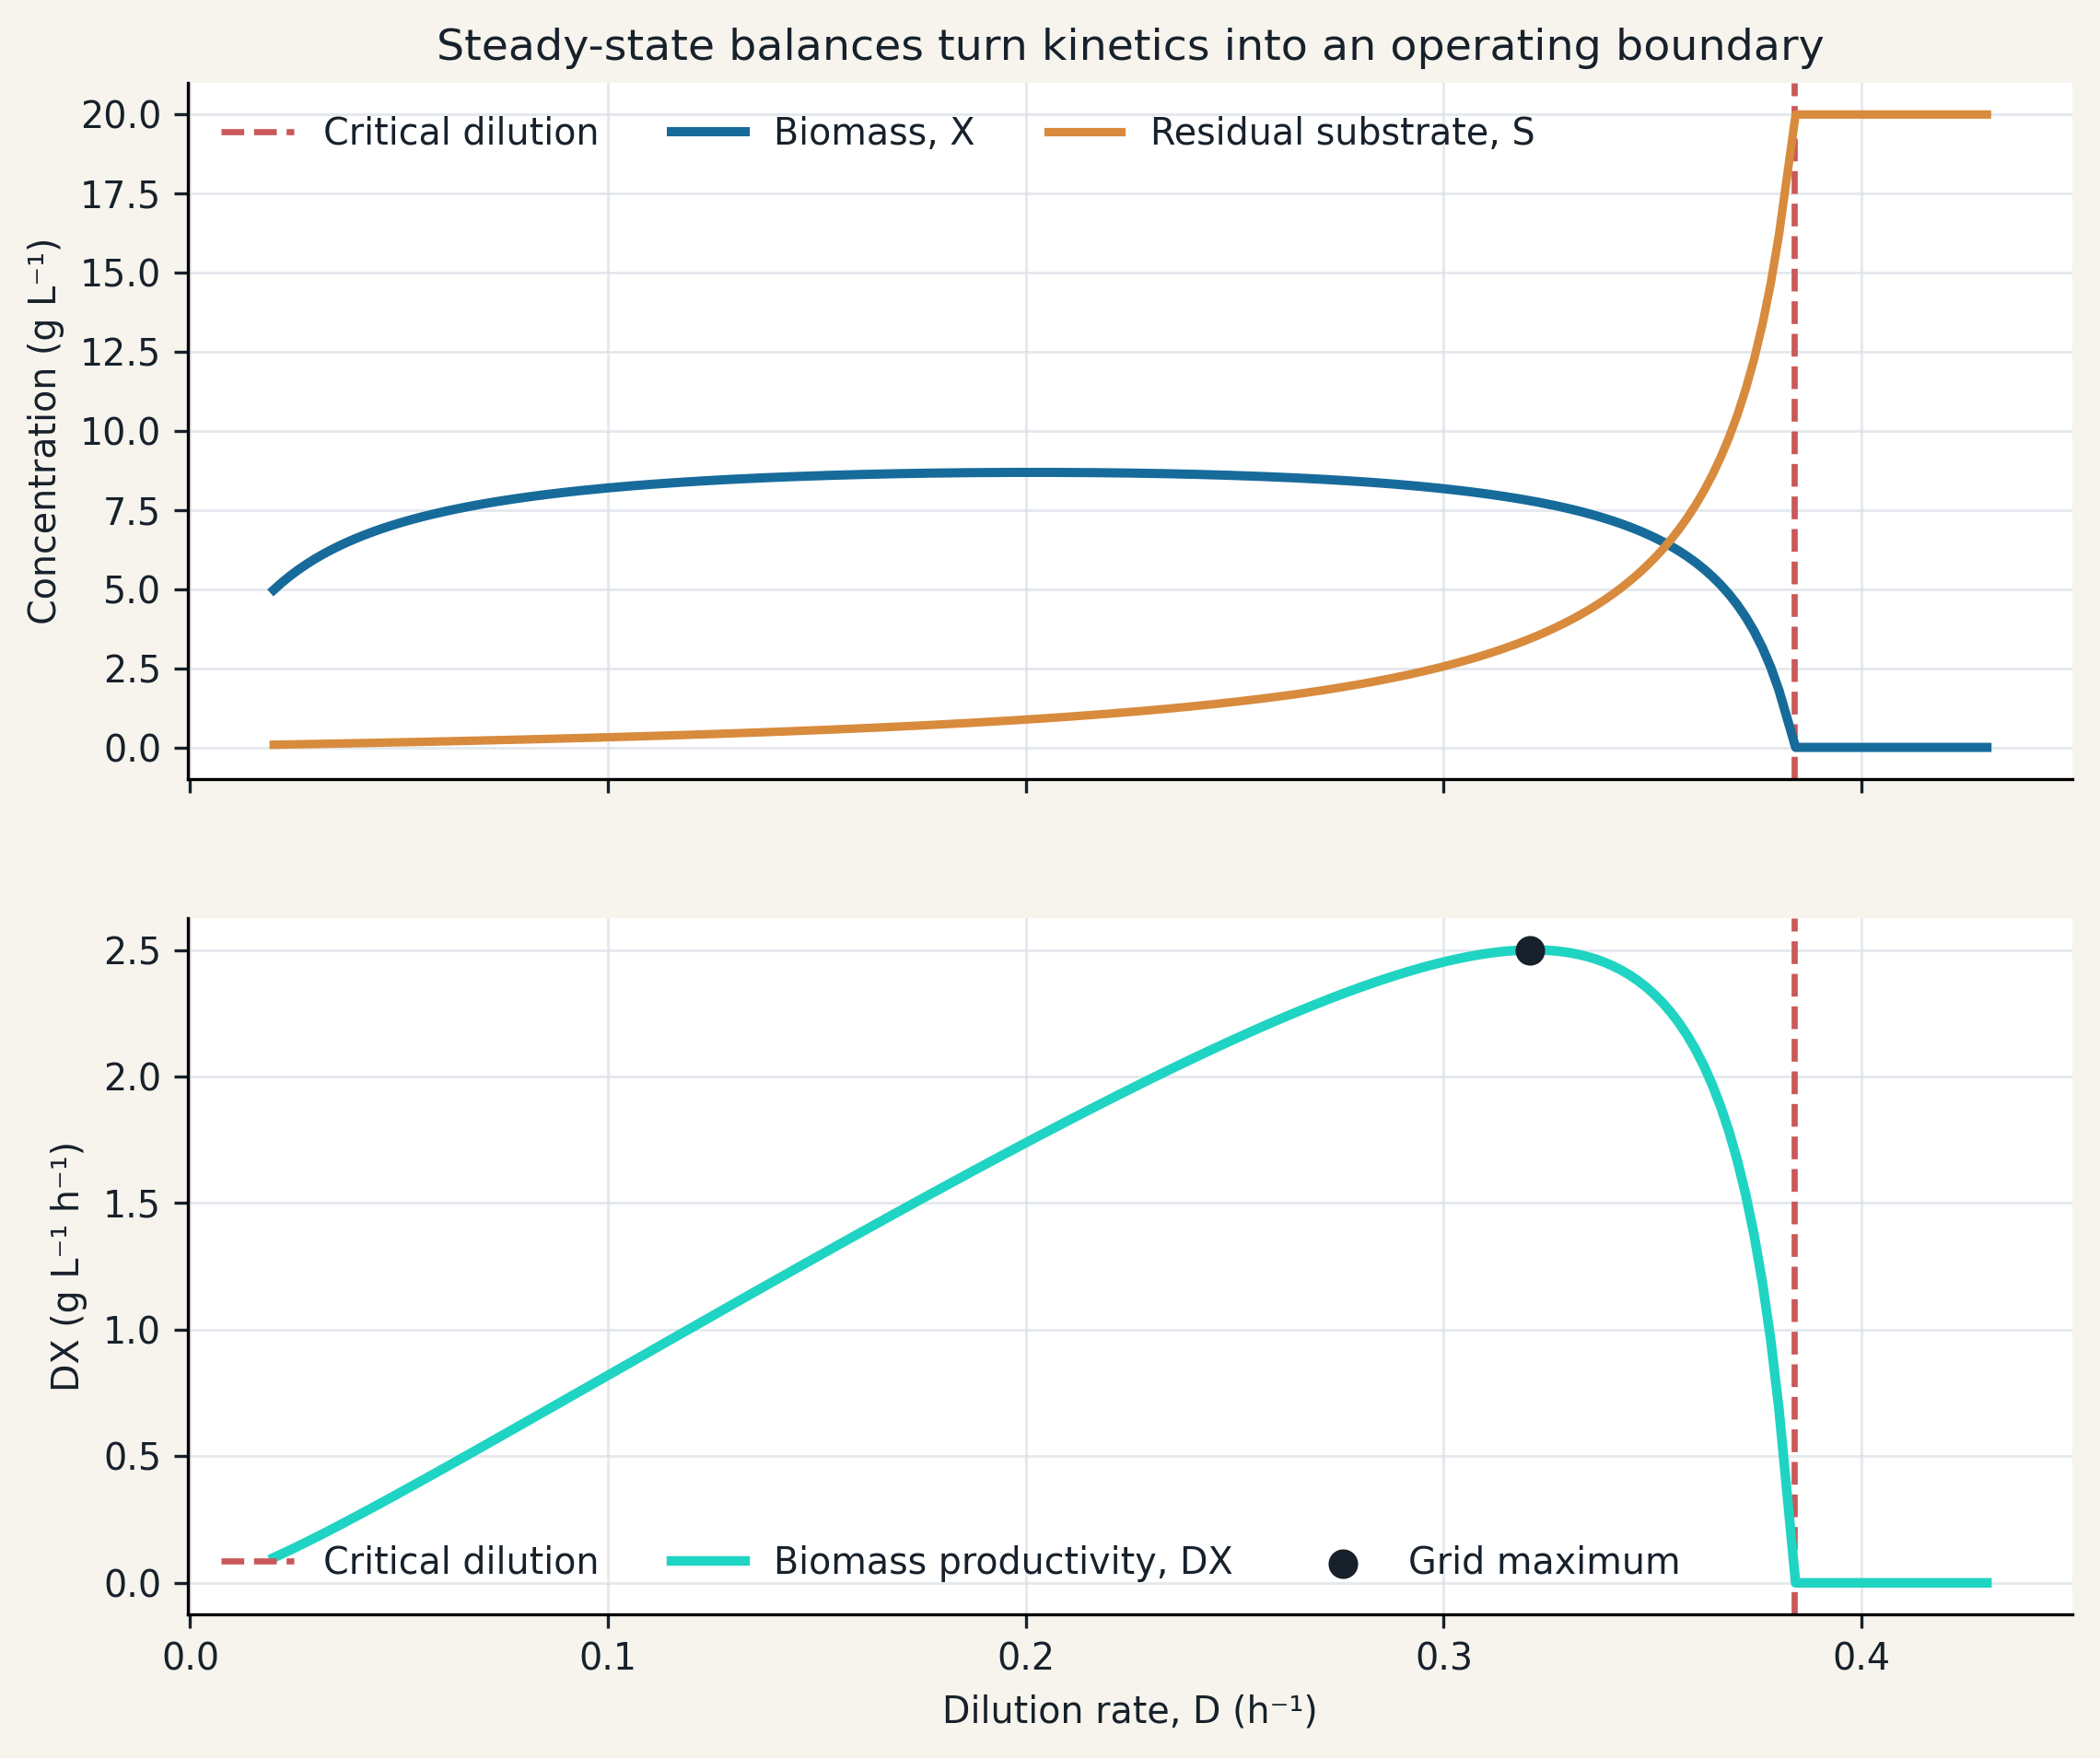
La Figura 3 hace visible el compromiso. A baja dilución, el sustrato residual es pequeño y la biomasa es alta, pero el caudal de salida limita la producción volumétrica por tiempo. Al aumentar \(D\), la productividad crece hasta una zona máxima; después, la biomasa cae y el sustrato residual aumenta con rapidez.
La línea vertical marca \(D_{crit}\), no un salto físico instantáneo. La rama de biomasa positiva se acerca a cero y la solución de lavado conserva \(S=S_{in}\). La forma proviene de los supuestos del modelo; datos reales pueden mostrar mantenimiento, inhibición, cambios de morfología o limitaciones adicionales.
El gráfico es una herramienta de hipótesis. Sugiere qué rango merece experimentación y dónde la sensibilidad se vuelve crítica. No sustituye un ensayo de estabilidad ni un análisis de riesgo.
Productividad no es concentración
La productividad volumétrica de biomasa a la salida se define como:
\[ P_X=DX. \tag{9}\]
Una concentración alta con caudal muy bajo puede producir menos masa por tiempo que una concentración moderada con mayor caudal. En la malla evaluada, la productividad máxima calculada es 2.49992 g L⁻¹ h⁻¹ en \(D=0.32053\) h⁻¹. Ese punto no coincide con la máxima concentración de biomasa ni con la máxima conversión de sustrato.
El objetivo de proceso determina la métrica relevante. Si se desea biomasa, \(DX\) puede ser útil; si se desea un metabolito, su cinética puede estar asociada o no al crecimiento. Si la prioridad es consumo de sustrato, estabilidad o calidad, el óptimo cambia. Optimizar una cifra antes de definir el objetivo produce precisión sin pertinencia.
Un cambio de caudal es un experimento dinámico
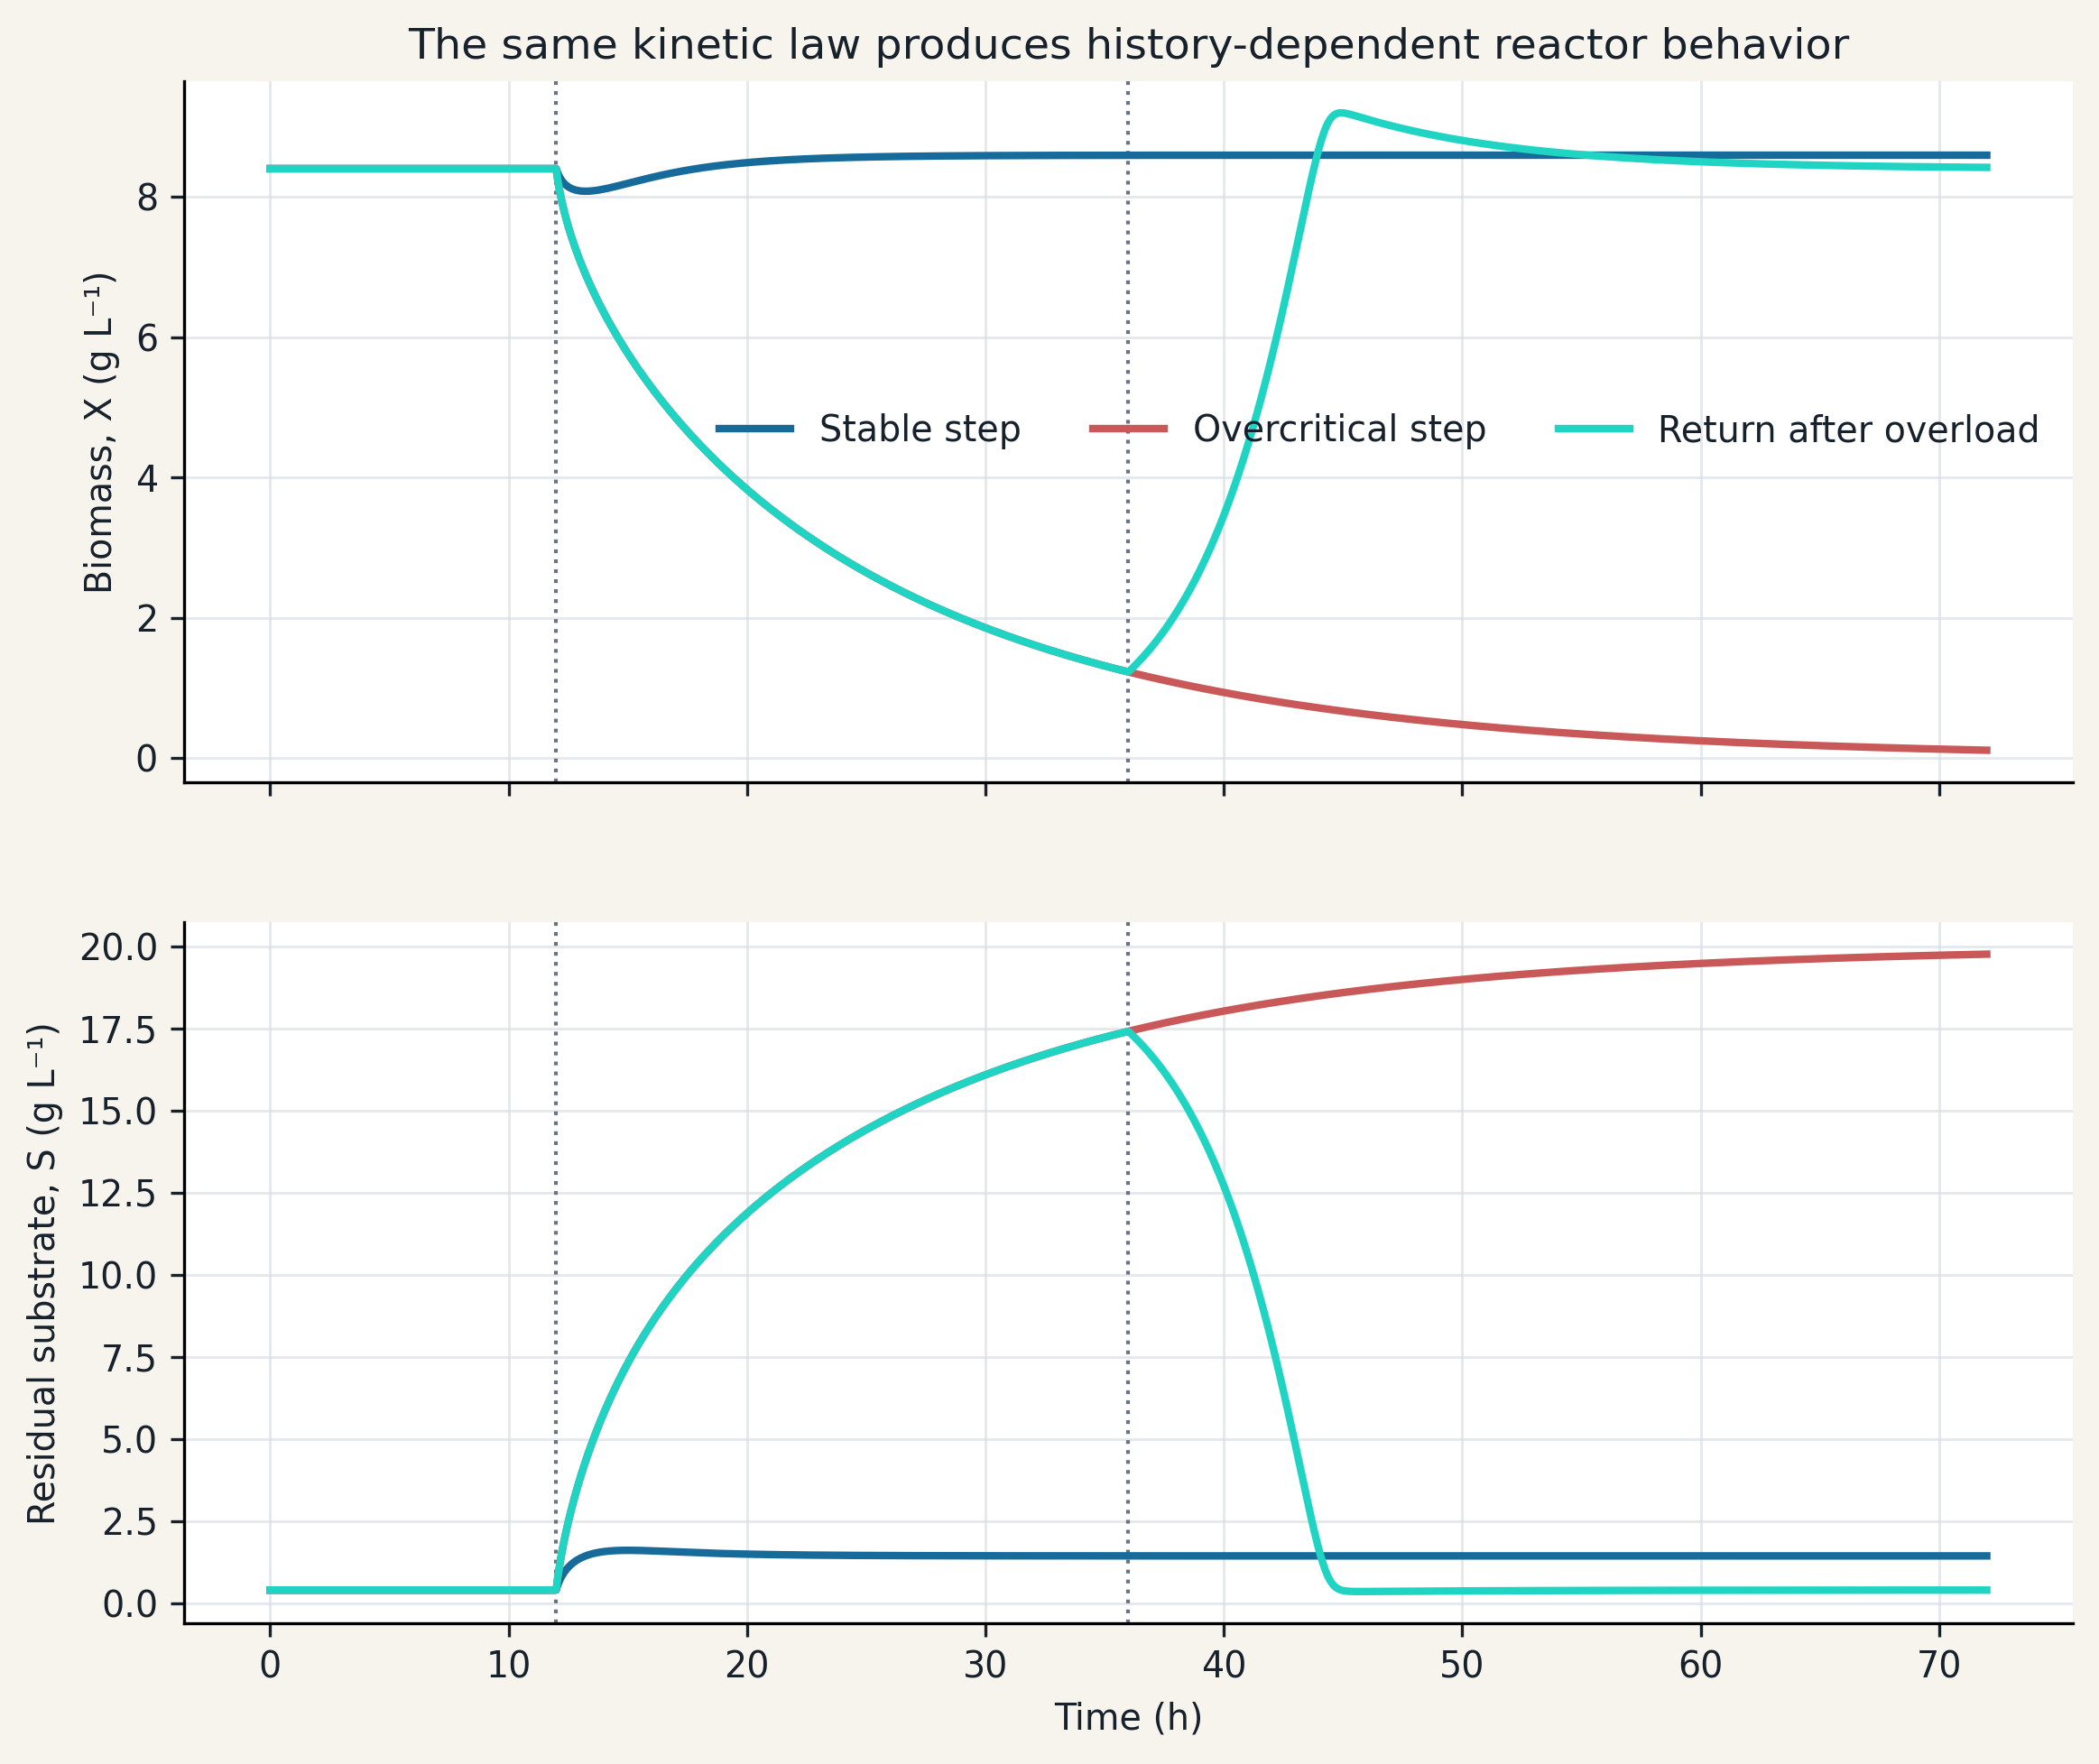
La Figura 4 integra los balances con Runge–Kutta de cuarto orden. Los tres escenarios parten del estado correspondiente a \(D=0.12\) h⁻¹. A las 12 h, el escenario estable cambia a 0.25 h⁻¹; el sobrecrítico cambia a 0.45 h⁻¹; el de recuperación mantiene 0.45 h⁻¹ hasta las 36 h y luego regresa a 0.12 h⁻¹.
El paso estable conduce a otro estado positivo. El paso sobrecrítico hace caer biomasa y subir sustrato, pero a las 72 h aún quedan 0.11002 g/L: el lavado es una trayectoria asintótica, no una desaparición inmediata. Cuando el caudal regresa antes, la biomasa se recupera hasta 8.41828 g/L a las 72 h porque el modelo nunca llegó exactamente a cero.
En un sistema biológico real, una población muy pequeña puede perder viabilidad, contaminarse o entrar en estados no descritos por Monod. Por eso la recuperación matemática indica una posibilidad dentro del modelo, no una garantía operacional.
La historia inicial importa
Los balances son ecuaciones diferenciales: para predecir necesitan condiciones iniciales. Dos reactores con iguales \(D\), \(S_{in}\) y parámetros pueden mostrar transitorios diferentes si comienzan con inventarios distintos. El estado estacionario oculta esa dependencia porque resume el final teórico de una trayectoria estable.
La duración del experimento debe compararse con las escalas \(1/D\), \(1/\mu\) y con la cercanía a la frontera. Cerca de crecimiento neto cero, el retorno puede ser lento. Declarar un “estado estacionario” después de un tiempo fijo sin verificar pendientes y balances puede convertir un transitorio en un dato cinético sesgado.
Una estrategia más sólida registra el historial de alimentación, cuantifica estabilidad previa y conserva las series completas. Los puntos finales por sí solos no permiten distinguir una convergencia lenta de un nuevo equilibrio.
Ajustar la meseta no identifica la media saturación
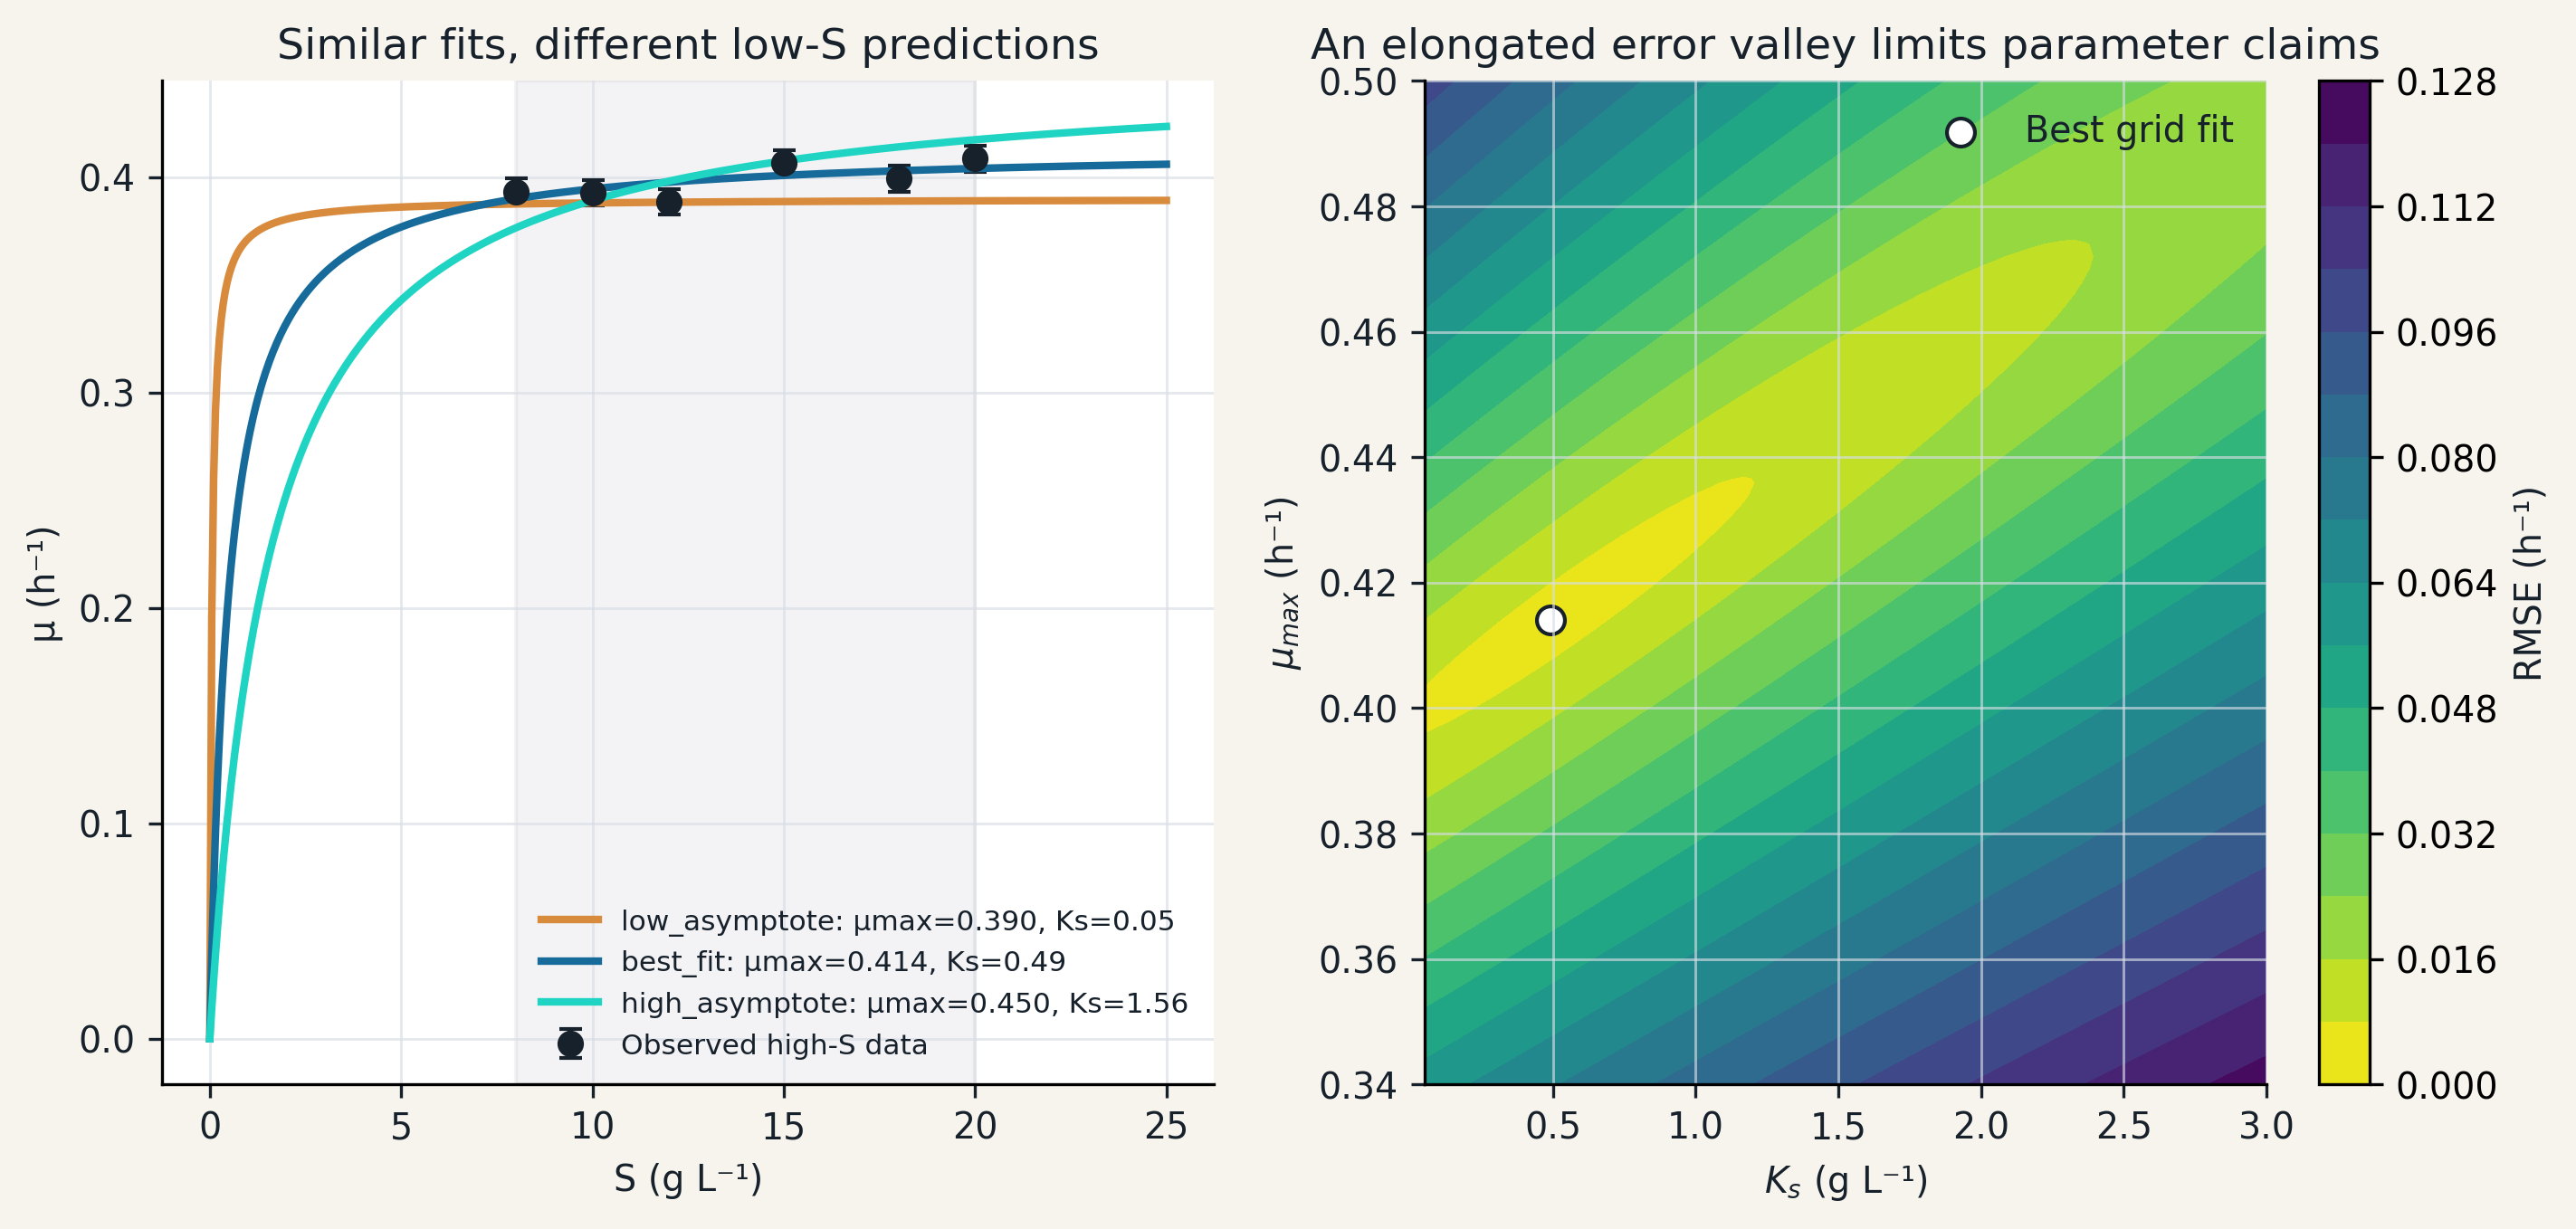
La Figura 5 evalúa una malla de \(mu_{max}\) y \(K_s\). El mejor punto discreto es \(mu_{max}=0.41400\) h⁻¹ y \(K_s=0.49250\) g/L, con RMSE de 0.00520 h⁻¹. Sin embargo, existen combinaciones vecinas con errores pequeños porque las observaciones se concentran en la meseta.
Tres candidatos razonables en la ventana alta predicen a \(S=0.2\) g/L tasas entre 0.05108 y 0.31200 h⁻¹. La discrepancia es grande precisamente donde no existen observaciones. Una predicción de lavado o recuperación basada en esa región heredaría la ambigüedad.
La identificabilidad práctica pregunta si la cantidad y calidad de los datos permiten estimar parámetros con precisión útil. Raue y colaboradores muestran cómo el perfil de verosimilitud ayuda a detectar parámetros no identificables en modelos dinámicos (Raue et al. 2009). Aquí la malla cumple una función pedagógica similar: hace visible el valle de soluciones compatibles.
Sensibilidad: qué cambia cuando cambia una entrada
Para una salida \(y=f(\theta)\), una sensibilidad local se expresa como:
\[ c_i=\frac{\partial y}{\partial \theta_i}. \tag{10}\]
La derivada tiene unidades de salida por unidad del parámetro. Un valor grande no significa que el parámetro sea incierto; significa que, si cambia, la salida responde con fuerza alrededor del punto evaluado. Incertidumbre y sensibilidad son conceptos separados que se combinan en la propagación.
En la biomasa nominal, la sensibilidad al rendimiento es 17.16706 g/L por unidad de g/g, mientras la sensibilidad a \(k_d\) es −52.86310 en las unidades correspondientes. Estas magnitudes no se comparan directamente sin considerar escalas e incertidumbres estándar. El signo sí informa dirección: mayor decaimiento reduce la biomasa predicha.
Las sensibilidades locales pueden cambiar cerca del lavado y no describen respuestas grandes o no lineales. Para decisiones próximas a una frontera conviene complementar derivadas con escenarios, perfiles o simulación Monte Carlo.
De sensibilidad a incertidumbre de predicción
Con entradas no correlacionadas y aproximación de primer orden, la incertidumbre estándar combinada es:
\[ u_c^2(y)=\sum_i\left(c_i u(\theta_i)\right)^2. \tag{11}\]
La formulación sigue el marco de JCGM 100:2008 (Joint Committee for Guides in Metrology 2008). En el ejemplo, se asignan incertidumbres pedagógicas a \(mu_{max}\), \(K_s\), \(Y_{X/S}\), \(k_d\), \(S_{in}\) y \(D\). La biomasa nominal tiene incertidumbre estándar combinada de 0.55136 g/L y una incertidumbre expandida con \(k=2\) de 1.10271 g/L.
La contribución dominante proviene del rendimiento supuesto, seguida por decaimiento y concentración de alimentación. Esto no demuestra que siempre sean las variables dominantes; refleja este punto, estas incertidumbres y este modelo. El presupuesto sirve para priorizar: mejorar un parámetro de contribución despreciable cambia poco la predicción, mientras revisar rendimiento o pérdidas puede aportar más.
La aproximación supone linealidad local y entradas independientes. Si parámetros se estiman conjuntamente, su covarianza debe incluirse. Cerca del lavado, una distribución simétrica de entradas puede generar una salida fuertemente asimétrica y el intervalo \(k=2\) pierde interpretación simple.
Parámetros aparentes y mecanismos ausentes
Un parámetro ajustado absorbe todo lo que el modelo no representa y que afecta la señal. Si existe limitación de oxígeno, \(mu_{max}\) estimada puede convertirse en una tasa efectiva del conjunto biología–transferencia. Si el sensor retrasa la señal, el ajuste puede atribuir ese retardo a la cinética. Si cambia el rendimiento, \(K_s\) puede compensar parte del error.
Por eso los parámetros deben acompañarse por método, rango, condiciones y estructura del modelo. Llamarlos “intrínsecos” requiere evidencia independiente de que transporte, mezcla y medición no controlan la observación. Esta publicación no intenta resolver transferencia de masa ni calor; marca la frontera para que esos fenómenos no se escondan dentro de una constante.
Comparar modelos alternativos también exige más que escoger el menor RMSE. Monod, Contois e inhibición de Andrews responden preguntas diferentes (Contois 1959; Andrews 1968). La selección debe considerar residuos, plausibilidad, predicción fuera de muestra y experimentos capaces de discriminar mecanismos.
Diseñar datos que respondan la pregunta
Si el objetivo es estimar \(K_s\), medir solo cerca de saturación es ineficiente. Se necesitan puntos alrededor y por debajo de \(K_s\), con resolución y control suficientes para que la variación observada no sea dominada por otros factores. Si el objetivo es localizar lavado, son útiles escalones o barridos de dilución con tiempos de estabilización justificados y márgenes que no comprometan el cultivo.
Un buen diseño define antes del ensayo: variable de interés, rango, precisión requerida, estados iniciales, frecuencia, duración, criterio de estabilidad y análisis previsto. También declara qué resultados refutarían el modelo. Recolectar muchos puntos en una región redundante puede producir una curva visualmente densa con poca información nueva.
Los datos dinámicos suelen contener información que los estados estacionarios pierden, pero exigen modelos de sensor, historial de entradas y condiciones iniciales. El beneficio no es gratuito: aumenta el contenido informativo y también la responsabilidad de documentar.
Qué puede y qué no puede concluirse
El caso permite concluir que, bajo los supuestos declarados, flujo y cinética determinan conjuntamente estados, transitorios y una frontera de lavado. También demuestra que la misma calidad de ajuste en una ventana no garantiza la misma extrapolación y que una predicción debe acompañarse por incertidumbre.
No permite concluir que un biorreactor real alcance 8.58353 g/L, que su caudal crítico sea 23.03077 L/h o que pueda recuperarse después de una sobrecarga. Esos números pertenecen a un modelo pedagógico. Tampoco identifica un microorganismo, una composición de medio, un coeficiente de transferencia o una geometría.
La distinción protege la utilidad de la información. Un ejemplo bien limitado enseña relaciones transferibles sin disfrazarse de evidencia industrial. Para aplicar el marco a un equipo se necesitarían caracterización física, protocolo biológico, datos trazables, calibración de sensores, análisis de residuos y revisión de riesgos.
Flujo de trabajo recomendado
Primero, defina la frontera: volumen, corrientes, especies y variable de biomasa. Segundo, escriba balances antes de escoger una ley cinética. Tercero, seleccione el modelo mínimo capaz de responder la pregunta. Cuarto, diseñe condiciones que exciten los parámetros relevantes. Quinto, conserve datos crudos, transformaciones y unidades. Sexto, estime parámetros con diagnósticos de identificabilidad y residuos. Séptimo, propague incertidumbre hasta la salida que sostiene la decisión.
Después, pruebe predicciones en condiciones no usadas para ajustar. Si el modelo falla sistemáticamente, amplíe el mecanismo solo con justificación. Finalmente, comunique resultados como condicionales: modelo, rango, incertidumbre y límites. Esta secuencia evita que una ecuación elegante adquiera más autoridad que la evidencia disponible.
Reproducibilidad y contrato de publicación
scripts/generate_evidence.py regenera tablas, resultados y cinco figuras con dependencias fijadas. La integración usa un paso de 0.01 h; los datos exportados se muestrean cada 0.05 h. La aleatoriedad aparece únicamente en las observaciones sintéticas y usa seed = 2405. scripts/validate_editions.py comprueba identidad, ecuaciones, figuras, citas, valores de control y profundidad equivalente entre idiomas.
El HTML es la edición canónica. Este paquete no genera ni almacena PDF, DOCX o ePub. Si una persona necesita un PDF, puede usar la función de impresión del navegador desde la superficie publicada. Esa elección reduce artefactos duplicados y mantiene una única versión científica navegable. La publicación pública se gestionará exclusivamente desde Nhilson73/Nebula_Science_Web; este repositorio conserva la fuente científica aprobada.
Conclusiones
Una ley cinética no es el comportamiento observado. Entre ambos aparecen flujo, inventario, pérdidas, historia, medición y estructura del modelo. En el CSTR pedagógico, \(D\) conecta tiempo espacial y crecimiento; la condición \(mu=D+k_d\) explica el estado estacionario; la frontera de lavado emerge cuando el crecimiento disponible deja de compensar pérdidas.
El análisis muestra además que un buen ajuste no basta. La ventana de datos determina qué parámetros pueden identificarse, la sensibilidad conecta parámetros con salidas y la incertidumbre traduce esa dependencia a una afirmación cuantificada. El valor de un modelo no reside en producir muchos decimales, sino en indicar qué observaciones son compatibles, qué predicciones son frágiles y qué experimento debería hacerse después.
La lección central es operativa: antes de atribuir un cambio a la cinética intrínseca, hay que demostrar que balances, transporte, medición e historia no ofrecen una explicación alternativa. Esa disciplina convierte una ecuación de libro en una herramienta responsable para comprender procesos.
Declaraciones
Disponibilidad de datos y código. Todos los datos, figuras y resultados se regeneran desde el script incluido en esta edición.
Conflictos de interés. No se declaran conflictos de interés.
Licencia. CC BY 4.0.
Estado editorial. Versión 1.0 aprobada; G0–G8 cerrados.
Uso previsto. Educación técnica y demostración metodológica; no validación de equipo ni recomendación operativa.